
29 Oct 2026
Panc02 细胞——用于胰管腺癌研究的同基因小鼠模型
A Syngeneic Murine Model for Pancreatic Ductal Adenocarcinoma Research

Panc02 细胞——用于胰腺导管腺癌研究的同基因小鼠模型
创建日期:2026年7月7日 | 最后审阅日期:2026年7月7日 | 作者:亨利·施韦格勒
引言
该Panc02 细胞 该细胞系——亦称为Panc-02、Panc 02、Pan02、Pan-02、PAN 02和Panc02-H0——是一种从小鼠C57BL/6模型中化学诱导的肿瘤建立的小鼠胰管腺癌(PDAC)细胞系。 科贝特(Corbett)及其同事于1984年首次描述了该细胞系的建立过程,其源自将载有3-甲基胆蒽的棉线植入胰腺组织后产生的导管腺癌。[1] 自那时起,Panc02已成为研究胰腺肿瘤和胰管型癌最广泛应用的同基因小鼠模型之一。 由于其与具有完全免疫功能的 C57BL/6 遗传背景的兼容性,该模型在肿瘤微环境研究、免疫肿瘤学研究以及新型治疗方法(包括化疗联合方案、纳米颗粒药物递送系统以及针对胃肠道微生物组的免疫治疗策略)的临床前评估中不可或缺。
要点总结
- Panc02(CVCL_D627)是一种源自C57BL/6小鼠化学诱导性胰腺肿瘤的小鼠胰腺导管腺癌(PDAC)细胞系,于1984年首次建立。
- 其同系C57BL/6遗传背景使得能够进行具有完全免疫功能的体内实验,从而保留了原生的肿瘤-免疫相互作用。
- Panc02 被广泛用于再现胰腺肿瘤微环境的原位移植模型。
- 该细胞系为评估化疗耐药性、新型药物递送系统及免疫治疗策略提供了一个可靠的平台。
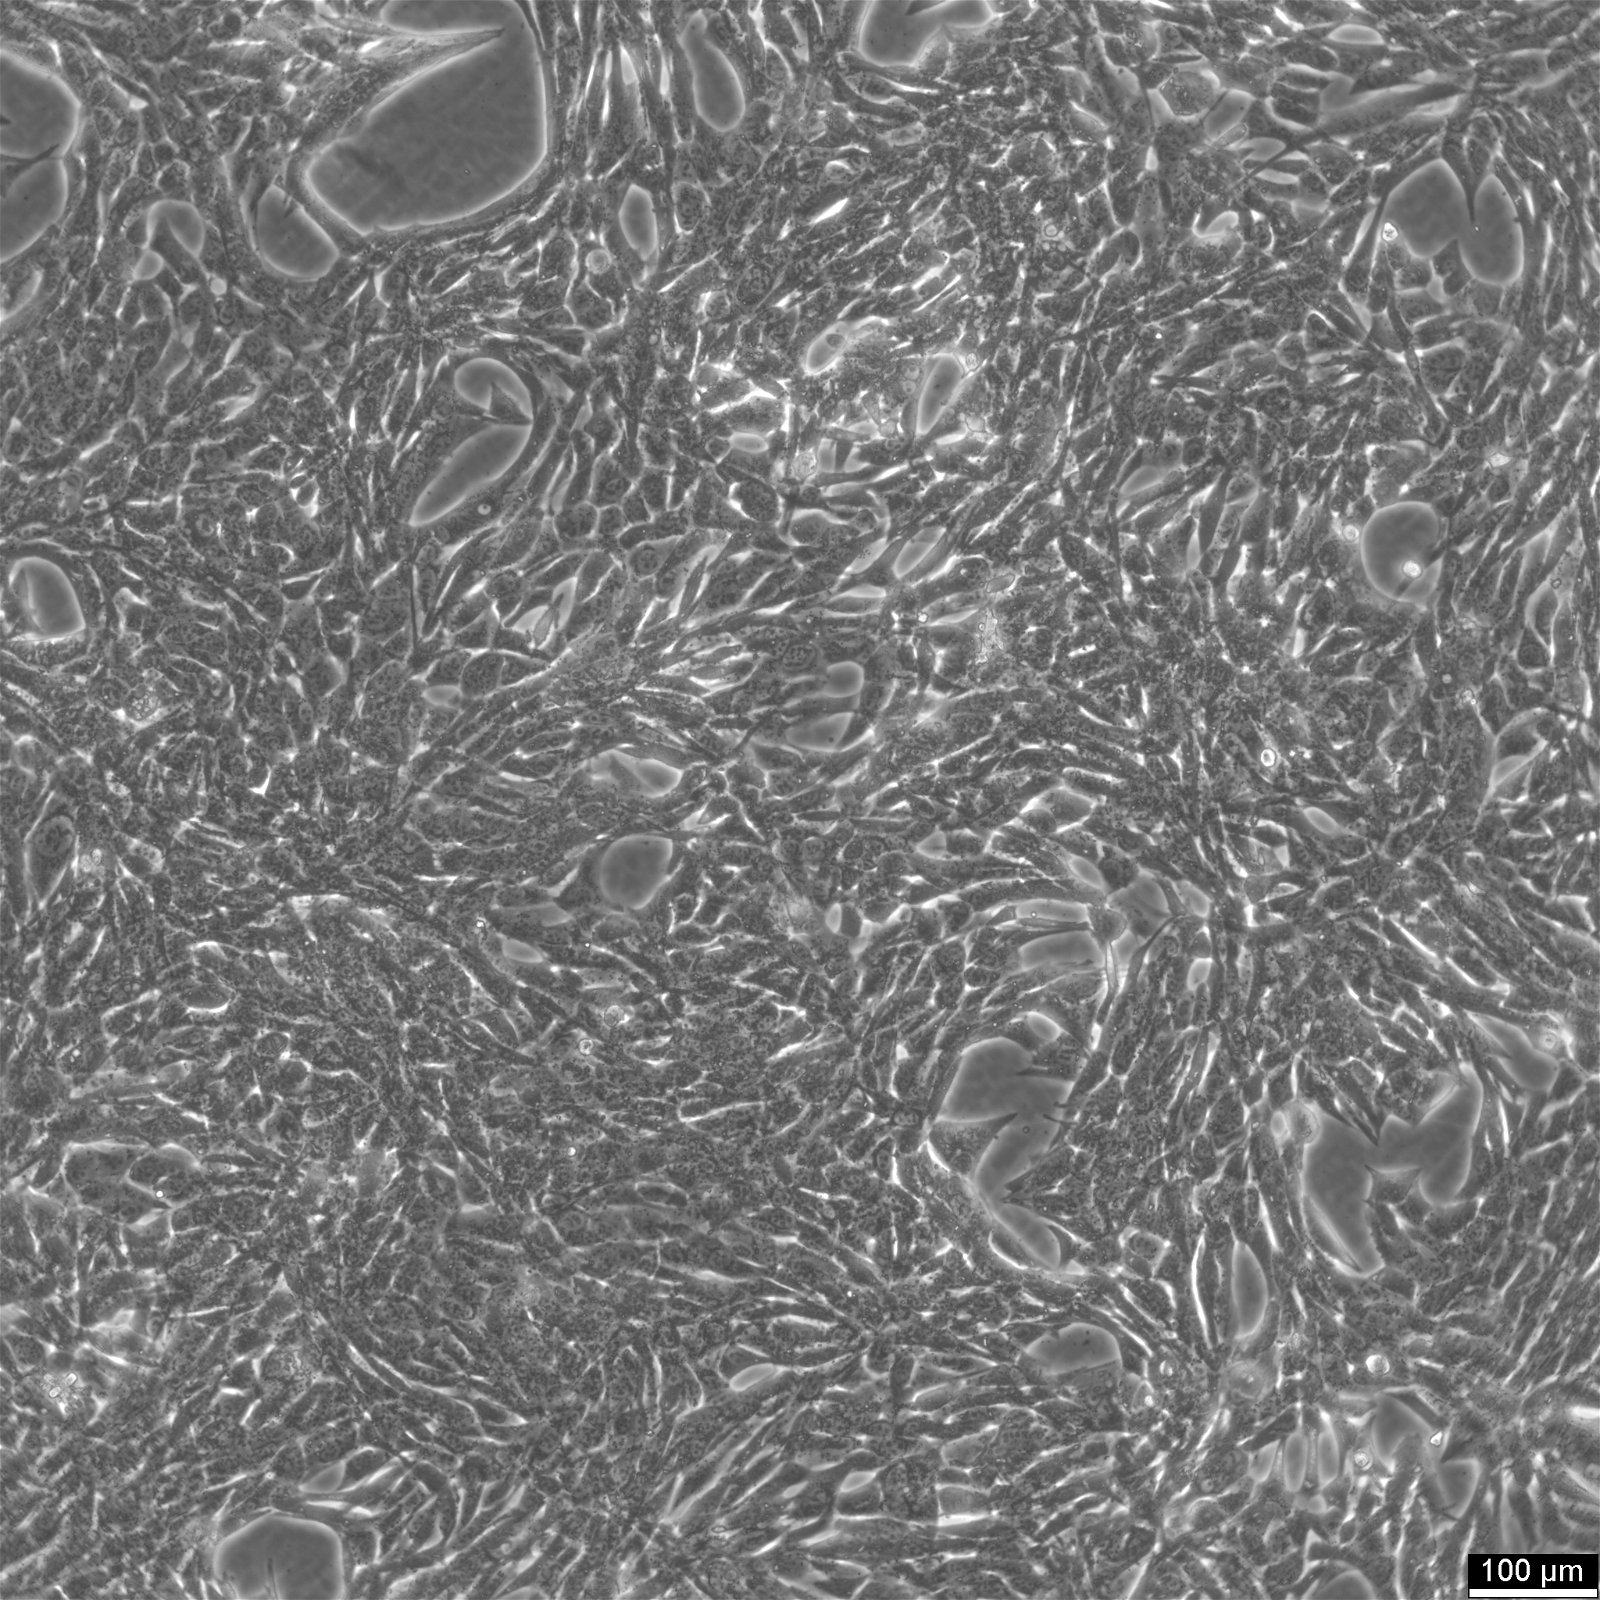
- Panc02 的细胞倍增时间约为 61 小时,且以贴壁培养方式生长。
- 已从Panc02中构建了大量工程化衍生物和报告菌株(例如,表达萤火虫蛋白的变体),用于专门的研究应用。
什么是Panc02?
Panc02 是一种源自 C57BL/6 的小鼠胰腺导管腺癌细胞系(Cellosaurus 登录号 CVCL_D627)。该细胞系源自一只有性别为雄性的供体小鼠的胰腺组织,由致癌物诱导形成肿瘤后建立。 该细胞系属于癌细胞系类别,由胰管组织建立,再现了胰管腺癌的组织学特征。基因组分析证实,Panc02 携带与胰管腺癌(PDAC)生物学相关的突变,为机制研究提供了遗传学上明确的背景。[2] 在“Cellosaurus”条目中未记录捐赠者的年龄数据。
比较表征研究证实,在原位移植模型中,Panc02 呈现出不规则的、指状生长模式,具有局部侵袭性,且其组织学特征与胰腺腺癌一致。[3] 该细胞系的细胞倍增时间约为61小时。由于其与C57BL/6小鼠(最常用的近交系之一)具有同基因相容性,因此对于免疫功能完好的临床前模型而言尤为宝贵。 Panc02经多次体内传代后,产生了侵袭性逐渐增强的衍生物,其中最成熟的当属Panc02-H7,这证明了该模型在研究肿瘤演变和转移进展方面的能力。[4]
细胞培养信息
- 中
- RPMI 1640,含 2.0 mM 稳定谷氨酰胺,含 2.0 g/L NaHCO3, 10% FBS
- 脱附试剂
- Accutase,37°C下反应10分钟
- 冷冻培养基
- CM-1
- 种群倍增时间
- 约61小时
- 生长类型
- 依附者

Panc02细胞的优势
Panc02的最主要优势在于其与C57BL/6小鼠品系的同基因相容性。这意味着实验可以在具有完全免疫功能的宿主中进行,从而使研究人员能够研究胰腺肿瘤细胞与宿主免疫系统之间的真实相互作用。 与需要使用免疫缺陷小鼠的异种移植模型不同,Panc02 系统保留了 T 细胞应答、巨噬细胞活性以及自然杀伤细胞功能——这些因素对现代免疫疗法研究都至关重要。 这一特点使Panc02成为研究胰腺肿瘤微环境中CD4阳性和CD8阳性T淋巴细胞动态的首选模型。
在移植途径方面,Panc02 同样具有极高的灵活性。 研究人员可根据实验目的选择皮下、原位或腹腔内移植方式。原位移植模型将细胞直接注射到胰头部位,最真实地再现了人类胰腺导管腺癌(PDAC)的解剖学和免疫学环境。[5] 此外,还提供了经过工程改造的Panc02衍生物——包括表达荧光素酶的菌株,例如Panc02-Luc 细胞 — 能够对活体动物体内的肿瘤生长和转移进行无创生物发光成像,从而大幅提高实验通量并减少动物使用数量。
从实用角度来看,Panc02 是一种生长稳健且可靠的贴壁细胞系,其倍增时间约为 61 小时,这一特性已得到充分表征。该细胞系对多种化疗药物和免疫调节治疗均表现出可重复的反应,因此是开展药物比较研究的绝佳平台。 关于 Panc02 的丰富文献——跨越四十余年——为研究人员提供了丰富的历史基准数据和经过验证的实验方案,从而降低了新实验室的入门门槛。
Panc02细胞的局限性
尽管Panc02被广泛使用,但其存在重要的生物学局限性。该细胞系是通过化学致癌作用建立的,而非通过人类胰腺导管腺癌(PDAC)典型的渐进性突变积累过程建立的。 人类胰腺导管腺癌最常见的病理特征包括致癌性 KRAS 突变、CDKN2A 失活、TP53 突变以及 SMAD4 缺失。对 Panc02 进行的基因组测序揭示了截然不同的突变图谱,这可能会限制将药物反应数据直接外推至人类患者。[2] 因此,研究人员应将Panc02研究的结果视为产生假说的依据,而非对临床结局的直接预测。
另一个局限在于亲本Panc02细胞的转移能力相对较弱。在基线状态下,该细胞系无法高效地自发转移,这可能会限制其在研究晚期疾病方面的应用价值。寻求高度转移性模型的研究人员必须使用经连续传代的衍生物,例如Panc02-H7[4] 或者采用专门的体内筛选方法。此类衍生物的产生增加了实验的复杂性,并可能导致与亲本系相比出现额外的表型漂变。
最后,作为一种小鼠细胞系,Panc02无法完全再现人类胰腺癌的遗传异质性或基质复杂性。小鼠肿瘤微环境虽然具有免疫功能,但在免疫细胞亚群组成、细胞因子环境以及基质结构方面均与人类肿瘤微环境存在差异。 因此,在将候选疗法推进至临床转化之前,基于 Panc02 的研究结果应通过互补的人类细胞系模型或患者来源的类器官进行验证。
已通过STR认证,无支原体,可立即发货。点击此处查看完整规格并下单
应用
同基因原位模型与肿瘤微环境研究
Panc02是同基因原位胰腺导管腺癌(PDAC)建模的基石。 Partecke 及其同事于 2011 年对该模型进行了具有里程碑意义的表征,证明将 Panc02 原位注射到 C57BL/6 小鼠的胰头部位,可产生具有局部侵袭性且组织学特征与胰腺腺癌一致的肿瘤。 [5] 至关重要的是,该研究表明 Panc02 肿瘤呈现不规则的、指状生长模式——这与 6606PDA 细胞更趋于球形的生长模式形成鲜明对比——并且磁共振成像(MRI)能够可靠地监测该模型中肿瘤的纵向生长情况。 这些发现确立了Panc02作为胰腺癌研究中具有临床相关性的免疫功能完备研究平台的地位。
此后,同基因原位Panc02模型已被广泛应用于研究免疫抑制性肿瘤微环境。 Gnerlich 及其同事证明,Panc02 肿瘤会招募调节性 T 细胞(Tregs)来抑制抗肿瘤免疫,并且通过基因工程改造 Panc02 细胞使其分泌 IL-6,可促进 Th17 细胞的诱导,并提高肿瘤小鼠的存活率。 [6] 该研究突显了肿瘤免疫微环境的可塑性,以及在此模型中采用基于细胞因子的干预策略的可行性。
最近,Gao及其同事利用Panc02原位模型评估了基于补体的免疫疗法。[7] 通过在Panc02细胞上表达膜锚定型补体成分properdin,他们增强了半乳糖-α-1,3-半乳糖介导的补体激活,并提高了补体依赖性细胞毒性。 该模型对这种免疫干预表现出敏感性,凸显了其在解析胰腺肿瘤微环境中先天免疫通路方面的价值。 Park及其同事进一步利用Panc02移植小鼠模型,研究了作为胰腺癌进展驱动因素的糖尿病相关炎症,并通过量子点偶联适配体检测了循环肿瘤细胞。[8]
化疗耐药性与新型药物递送系统
吉西他滨耐药性是胰腺癌中一个关键的临床挑战,Panc02已被广泛用于研究这一问题并评估新型治疗策略。 Takhsha 及其同事在同基因 Panc02 小鼠模型中证明,ATG4B 抑制剂 UAMC-2526 通过抑制缺氧肿瘤微环境中的自噬,显著增强了吉西他滨的化疗效果。 [9] 该研究强调了抑制自噬如何能提高胰腺导管腺癌(PDAC)细胞对标准化疗的敏感性,为联合治疗方案提供了理论依据。 张及其同事进一步拓展了这一概念,开发出一种抗生素-药物偶联物(Tob-SS-Gm纳米颗粒),该偶联物通过二硫键将托布霉素与吉西他滨共价连接,靶向表达胞嘧啶脱氨酶并由此降解吉西他滨的肿瘤内细菌。 [10] 在Panc02细胞中的实验证实,这种偶联既保留了抗菌活性,也保留了化疗活性,从而确立了一种对抗化疗耐药性的双功能策略。
基于纳米颗粒的药物递送已成为Panc02研究的一个主要应用领域。Li及其同事证明,载有三萜苷且由枸杞多糖稳定的硒纳米颗粒,在Pan02细胞中的IC50值显著低于游离三萜苷,且具有持续的酸依赖性药物释放特性。 [11] Ge及其同事开发了RGD肽/硫酸葡聚糖纳米载体,利用整合素αvβ3–RGD与SR-A–硫酸葡聚糖的相互作用,从而实现药物在肿瘤中的优先富集。[12] 综上所述,这些研究表明Panc02可作为一种多功能的体外和体内筛选平台,用于纳米制剂的优化。
在Panc02中测试的其他药物递送创新包括基于外泌体的三药制剂和白蛋白纳米颗粒系统。 张及其同事将半乳凝集素-9 siRNA、吉西他滨前药和亚甲蓝装载到骨髓间充质干细胞来源的外泌体中,结果表明,在pH依赖性药物释放作用下,胰腺癌细胞的凋亡得到增强。 [13] Wen及其同事开发了载有α-茄碱的聚烯丙胺盐酸盐修饰牛血清白蛋白纳米颗粒,该制剂有效抑制了Panc02细胞的增殖、迁移和侵袭。 [14] Kong及其同事利用PANC02细胞膜来源的抗原,设计了一种CGT-Cls-PTX/CM纳米共递送系统,用于联合递送紫杉醇和肿瘤抗原,从而刺激树突状细胞成熟并缓解免疫抑制。[15]
免疫疗法与免疫调节
Panc02同基因模型具有免疫功能完备的特性,使其特别适合用于评估免疫治疗策略。 研究表明,源自橄榄油的多酚类化合物羟基酪醇可在体外通过STAT3/周期素D1信号通路抑制Panc02细胞增殖;而在原位肿瘤小鼠模型中,它不仅能抑制肿瘤生长、减少髓源性抑制细胞(MDSCs), 并增强了M1型巨噬细胞的极化。[16] 该研究充分说明了Panc02原位模型如何能够同时评估候选药物的直接细胞毒性作用及其免疫调节机制。
基于微生物组的免疫疗法也已利用Panc02模型进行了探索。 Li及其同事利用Panc02原位肿瘤移植模型开展了一项详细的小鼠研究,以评估粪便微生物群移植(FMT)联合5-氟尿嘧啶的疗效,结果表明FMT可调节肠道微生物群组成并增强全身免疫应答,从而提高抗肿瘤疗效。[17] Vruzhaj及其同事在基于PANC02的免疫治疗模型中,测试了经过工程改造的大肠杆菌Nissle 1917作为甘皮素-1(glypican-1)的口服递送载体,证实了GPC1-鞭毛蛋白融合蛋白在改良Panc02细胞中的表达和稳定性,这是迈向口服癌症疫苗接种的重要一步。 [18] 这些研究反映了人们对胃肠道微生物组作为胰腺癌免疫疗法调节因子日益增长的关注。
溶瘤病毒疗法是Panc02背景下研究的另一种免疫治疗模式。 一项针对包括Panc02在内的C57BL/6背景胰腺导管腺癌(PDAC)细胞系进行肿瘤间异质性比较的研究表明,溶瘤性水疱性口炎病毒在同基因系细胞系间的疗效存在显著差异,其中Panc02被用作参考点,以阐明病毒易感性的差异。 这项工作强调了在解读溶瘤病毒疗法结果时细胞异质性的重要性,并为设计克服肿瘤逃逸的联合治疗方案提供了依据。
转移与肿瘤进展机制
Panc02 在产生渐进性转移衍生物以研究胰腺导管腺癌(PDAC)扩散的分子基础方面发挥了关键作用。 Wang 及其同事通过反复的正位移植和肝微转移灶的分离,建立了 Panc02-H7 谱系,创造了一系列侵袭性日益增强的亚系,最终形成了 Panc02-H7,该亚系表现出腹膜播散以及向肝脏和肺部的远处转移。 [4] 该模型为在免疫功能正常的宿主中研究血源性及腹膜转移提供了最早的临床相关平台之一。
最近,Takahashi-Yamashiro及其同事通过三个连续的原位移植周期,建立了高度转移性的Panc02-3P衍生物细胞系。 [19] RNA测序结果显示,与亲本Panc02相比,Panc02-3P细胞表现出间质样基因表达变化,这表明赖氨酸氧化酶家族成员是胰腺导管腺癌(PDAC)进展中的新型分子靶点——即使在缺乏经典上皮-间质转化(EMT)转录因子变化的情况下也是如此。 王及其同事进一步探索了上皮-间质转化在 Panc02 生物学中的作用,他们证明黄酮类衍生物 FV-429 通过调节 Hippo/YAP1 通路和上皮-间质转化相关蛋白,抑制了胰腺癌细胞的迁移和侵袭。[20]
作为侵袭性胰腺导管癌(PDAC)标志之一的周神经侵袭(PNI),也利用Panc02进行了研究。Hua及其同事通过原位移植Panc02-luc细胞建立了周神经侵袭模型,并证明在PNI阳性的PDAC中,Slc26a9的表达显著升高。 [21] 机制研究表明,Slc26a9 参与促进肿瘤小鼠的焦虑样行为和机械性痛觉过敏,从而将肿瘤生物学与临床相关的疼痛表型联系起来。 张及其同事还利用Panc02皮下和原位肝转移模型,阐明了与衰老相关的因子EMP1在加速胰腺癌进展中的作用,并证明EMP1过表达会增强肿瘤生长和转移。[22]
光动力疗法与物理消融疗法
Panc02细胞已成为光动力疗法(PDT)和物理消融疗法的相关测试系统。徐及其同事基于吡咯叶绿素a合成了系列针对细胞器的光敏剂,评估了针对线粒体、 溶酶体、内质网及细胞核靶向变体,评估其将活性氧在关键亚细胞位点富集并增强PDT疗效的能力,相关测试涵盖了包括Panc02在内的多种癌细胞系。 [23] 这一系统性比较从机制层面阐明了细胞器靶向作为克服传统光敏剂局限性的一种策略。
Wang及其同事在Panc02细胞和皮下异种移植小鼠模型中,评估了低频超声刺激微气泡(USMB)与射频消融(RFA)联合治疗的效果。 [24] CCK-8实验显示,联合治疗显著抑制了Panc02细胞的增殖,且肿瘤小鼠的生存率得到提高,免疫相关和凋亡相关因子也发生了调节。 该研究证明了将物理消融方式与肿瘤微环境的声动力学扰动相结合的潜力,这一概念可在具有免疫功能的Panc02模型中进行独特验证。
结论
作为胰管腺癌的同基因、免疫功能完好的小鼠模型,Panc02(CVCL_D627)在胰腺癌研究中占据核心地位。 从 1984 年通过 C57BL/6 小鼠的化学致癌作用建立该细胞系 [1],到目前将其应用于药物递送纳米技术、肿瘤微环境免疫学、溶瘤病毒疗法和转移生物学等领域,该细胞系展现出了非凡的科学生命力。 其原位移植特性——由 Partecke 及其同事 [5] 进行了详尽记录——以及与现代生物发光成像技术的兼容性,使其成为用于胰腺肿瘤新型疗法临床前评估的多功能且严谨的平台。 无论您的实验室是研究胰管型癌,探索胃肠道微生物组在治疗反应中的作用,还是开发新一代纳米颗粒递送系统,Panc02都能提供经过科学验证的基础。请访问cition.com查看完整的产品规格,或购买Panc02细胞用于您的研究。
主要文献
- Corbett TH, Roberts BJ, Leopold WR (1984) 两种可移植胰腺导管腺癌在 C57BL/6 小鼠中的诱导及化疗反应。《癌症研究》(Cancer Research)。PMID: 6692374
- Wang Y, Zhang Y, Yang J (2012) 小鼠胰腺癌细胞中关键基因的基因组测序。《当代分子医学》。PMID: 22208613
- Torres MP、Rachagani S、Souchek JJ(2013)源自自发性胰腺腺癌基因工程小鼠模型的新型胰腺癌细胞系:在诊断和治疗中的应用。《PLoS One》。PMID: 24278292
- Wang B, Shi Q, Abbruzzese JL (2001) 一种具有临床相关性的转移性胰腺腺癌生物学与治疗的新型动物模型。《国际胰腺学杂志》。PMID: 11558631
- 帕特克 LI、森德勒 M、凯丁 A(2011)利用 Panc02 和 6606PDA 细胞系在 C57/BL6 小鼠中建立的胰腺腺癌同基因原位小鼠模型。《欧洲外科研究》。 PMID: 21720167
- Gnerlich JL、Mitchem JB、Weir JS(2010)在肿瘤微环境中诱导Th17细胞可提高胰腺癌小鼠模型的生存率。《免疫学杂志》。PMID:20805420
- Gao M、Kechagia S、Ramachandran M(2026)通过放大补体级联反应塑造肿瘤微环境,以改善胰腺癌模型中的免疫应答。《分子癌症治疗学》。PMID:41159389
- Park Y、Kim ST、Kim YM(2025)通过基于适配体的循环肿瘤细胞检测,在链脲佐菌素诱导的Panc02移植小鼠模型中评估糖尿病相关炎症在胰腺癌中的作用。《肝胆胰外科年鉴》。 PMID: 40759530
- Takhsha FS、Vangestel C、Tanc M(2021)ATG4B抑制剂UAMC-2526在胰管腺癌Panc02小鼠模型中增强吉西他滨的化疗效果。《肿瘤学前沿》。 PMID:34868951
- Zhang Z、Zhang F、Yang W(2026)抗生素-药物偶联物:通过清除肿瘤内细菌增强吉西他滨对胰腺癌的化疗-免疫治疗效果。《生物材料》。PMID:42302584
- Li X, Su Y, Lin N (2025) 枸杞多糖稳定的硒纳米颗粒递送三萜醇,在体外和体内诱导胰腺癌细胞凋亡。《ACS Omega》。PMID: 40352487
- Ge Y、Zhu X、Zhang Z(2025)基于RGD肽/硫酸葡聚糖的纳米载体载入三萜醇,用于胰腺癌治疗中对肿瘤细胞和M2样肿瘤相关巨噬细胞的双重靶向凋亡。《国际生物大分子杂志》。 PMID: 40345287
- 张瑞、张勇、郝峰(2025)外泌体介导的三重药物递送可增强胰腺癌细胞的凋亡。《凋亡:程序性细胞死亡国际期刊》。PMID: 40488835
- Wen Z、Luo S、Liu J(2025)载有α-茄碱的聚烯丙胺盐酸盐修饰牛血清白蛋白纳米颗粒用于胰腺癌化疗。《国际纳米医学杂志》。PMID: 40225222
- Kong Y、Zhao J、Xu B(2026)针对肿瘤微环境的CGT-Cls-PTX/CM纳米复合递送系统的构建及其协同效应。《纳米技术》。PMID: 41554179
- 王博、杨丽、刘涛(2021)羟基酪醇可抑制原位胰腺肿瘤小鼠体内的髓源性抑制细胞(MDSCs)并促进M1型巨噬细胞的生成。《药理学前沿》。PMID: 34858184
- 李R、胡Y、刘Y(2025)粪便微生物群移植通过调节肠道微生物群增强5-氟尿嘧啶在胰腺癌中的疗效。《微生物学前沿》。PMID: 41078530
- Vruzhaj I、Gambirasi M、Busato D(2025)基于肠道微生物群的免疫疗法:利用工程化大肠杆菌Nissle 1917实现胰腺癌中Glypican-1的口服给药。《Medicina》(立陶宛考纳斯)。 PMID: 40282924
- Takahashi-Yamashiro K、Miyauchi K、Shimomura K(2026)源自同基因原位模型的高转移性胰腺癌细胞中赖氨酸氧化酶家族成员的体外功能分析。《BMC癌症》。PMID: 42298507
- 王Z、潘X、马X(2025)FV-429通过Hippo/YAP1通路抑制胰腺癌细胞经上皮-间质转化(EMT)的迁移和侵袭。《抗癌药物》。PMID: 40071582
- 华B、黄X、陈L(2025)Slc26a9促进小鼠胰腺癌的神经周围侵袭。《生物化学与生物物理研究通讯》。PMID: 41232379
- 张杰、顾杰、张涛(2025)衰老过程及相关因子EMP1在促进可切除胰腺癌进展中的作用。《基因与疾病》。PMID: 40612666
- 徐勇、曾伟、刘瑞(2026)针对细胞器靶向的光敏剂可增强癌症光动力疗法。《生物偶联化学》。PMID: 42186767
- 王H、丁W、石H(2021)低频超声照射与射频消融联合治疗作为胰腺癌的协同治疗。《生物工程学》。PMID: 34696663
查看完整规格或订购 MC3T3-E1 细胞,请访问cytion.com.