
29 Oct 2026
Panc02-celler — En syngenisk musemodell for forskning på duktalt adenokarsinom i bukspyttkjertelen
A Syngeneic Murine Model for Pancreatic Ductal Adenocarcinoma Research

Panc02-celler — En syngenisk musemodell for forskning på duktalt adenokarsinom i bukspyttkjertelen
Opprettet: 7. juli 2026 | Sist gjennomgått: 7. juli 2026 | Av Henri Schwegler
Innledning
Den Panc02-celler Denne cellelinjen — også kjent som Panc-02, Panc 02, Pan02, Pan-02, PAN 02 og Panc02-H0 — er en musecellelinje av duktalt adenokarsinom i bukspyttkjertelen (PDAC) som er etablert fra en kjemisk indusert svulst hos C57BL/6-mus. Corbett og kolleger beskrev først etableringen av den i 1984, og utviklet den fra et duktalt adenokarsinom som oppstod etter implantasjon av bomullstråd tilsatt 3-metylkolantren i bukspyttkjertelvev. [1] Siden den gang har Panc02 blitt en av de mest brukte syngene musemodellene for å studere svulster i bukspyttkjertelen og duktalt karcinom i bukspyttkjertelen. Dens kompatibilitet med den fullt immunkompetente C57BL/6-bakgrunnen gjør den uunnværlig for studier av tumorens mikromiljø, immuno-onkologisk forskning og preklinisk evaluering av nye behandlingsformer — inkludert kombinasjoner av cellegift, legemiddeladministrasjonssystemer basert på nanopartikler og immunterapistrategier rettet mot tarmmikrobiomet.
Hovedpunkter
- Panc02 (CVCL_D627) er en PDAC-cellelinje fra mus, avledet fra kjemisk induserte svulster i bukspyttkjertelen hos C57BL/6-mus, og ble først etablert i 1984.
- Den syngene C57BL/6-bakgrunnen gjør det mulig å gjennomføre in vivo-eksperimenter med full immunfunksjon, samtidig som de naturlige interaksjonene mellom svulst og immunsystem bevares.
- Panc02 brukes i stor utstrekning i ortotopiske implantasjonsmodeller som gjenskaper mikromiljøet i bukspyttkjertelsvulster.
- Cellelinjen fungerer som en robust plattform for å evaluere resistens mot cellegift, nye legemiddeladministrasjonssystemer og immunterapistrategier.
- Panc02 har en fordoblingstid på omtrent 61 timer og vokser som en vedheftende kultur.
- Det er utviklet en rekke genmodifiserte derivater og reporterlinjer (f.eks. varianter som uttrykker luciferase) fra Panc02 for spesialiserte forskningsformål.
Hva er Panc02?
Panc02 er en musecellelinje av typen duktalt adenokarsinom i bukspyttkjertelen, med opprinnelse fra C57BL/6 (Cellosaurus-tilgangsnummer CVCL_D627). Den ble isolert fra bukspyttkjertelvev fra en hannmus etter kreftfremkallende stoff-indusert tumorutvikling. Cellelinjen tilhører kategorien kreftcellelinjer og ble etablert fra vev fra bukspyttkjertelens utførselskanaler, og gjenspeiler de histologiske kjennetegnene ved duktalt adenokarsinom i bukspyttkjertelen. Genomiske analyser har bekreftet at Panc02 bærer på mutasjoner som er relevante for PDAC-biologien, noe som gir et genetisk definert grunnlag for mekanistiske studier. [2] Det er ikke registrert opplysninger om donorens alder i oppføringen om Cellosaurus.
En sammenlignende karakterisering har bekreftet at Panc02 viser et uregelmessig, fingerlignende vekstmønster i ortotopiske implantasjonsmodeller, med lokal invasivitet og histologiske trekk som er typiske for adenokarsinom i bukspyttkjertelen. [3] Cellelinjen har en populasjonsdoblingstid på omtrent 61 timer. Den syngene kompatibiliteten med C57BL/6-mus – en av de mest brukte innavlede stammene – gjør den særlig verdifull for immunologisk intakte prekliniske modeller. Serielle in vivo-passasjer av Panc02 har resultert i stadig mer aggressive derivater, hvorav det mest etablerte er Panc02-H7, noe som viser modellens evne til å studere tumorutvikling og metastatisk progresjon. [4]
Informasjon om cellekultur
- Middels
- RPMI 1640, med 2,0 mM stabilt glutamin, med 2,0 g/L NaHCO₃, 10 % FBS
- Avskillingsmiddel
- Accutase, 10 minutter ved 37 °C
- Frysemedium
- CM-1
- Befolkningens doblingstid
- ~61 timer
- Veksttype
- Tilhenger

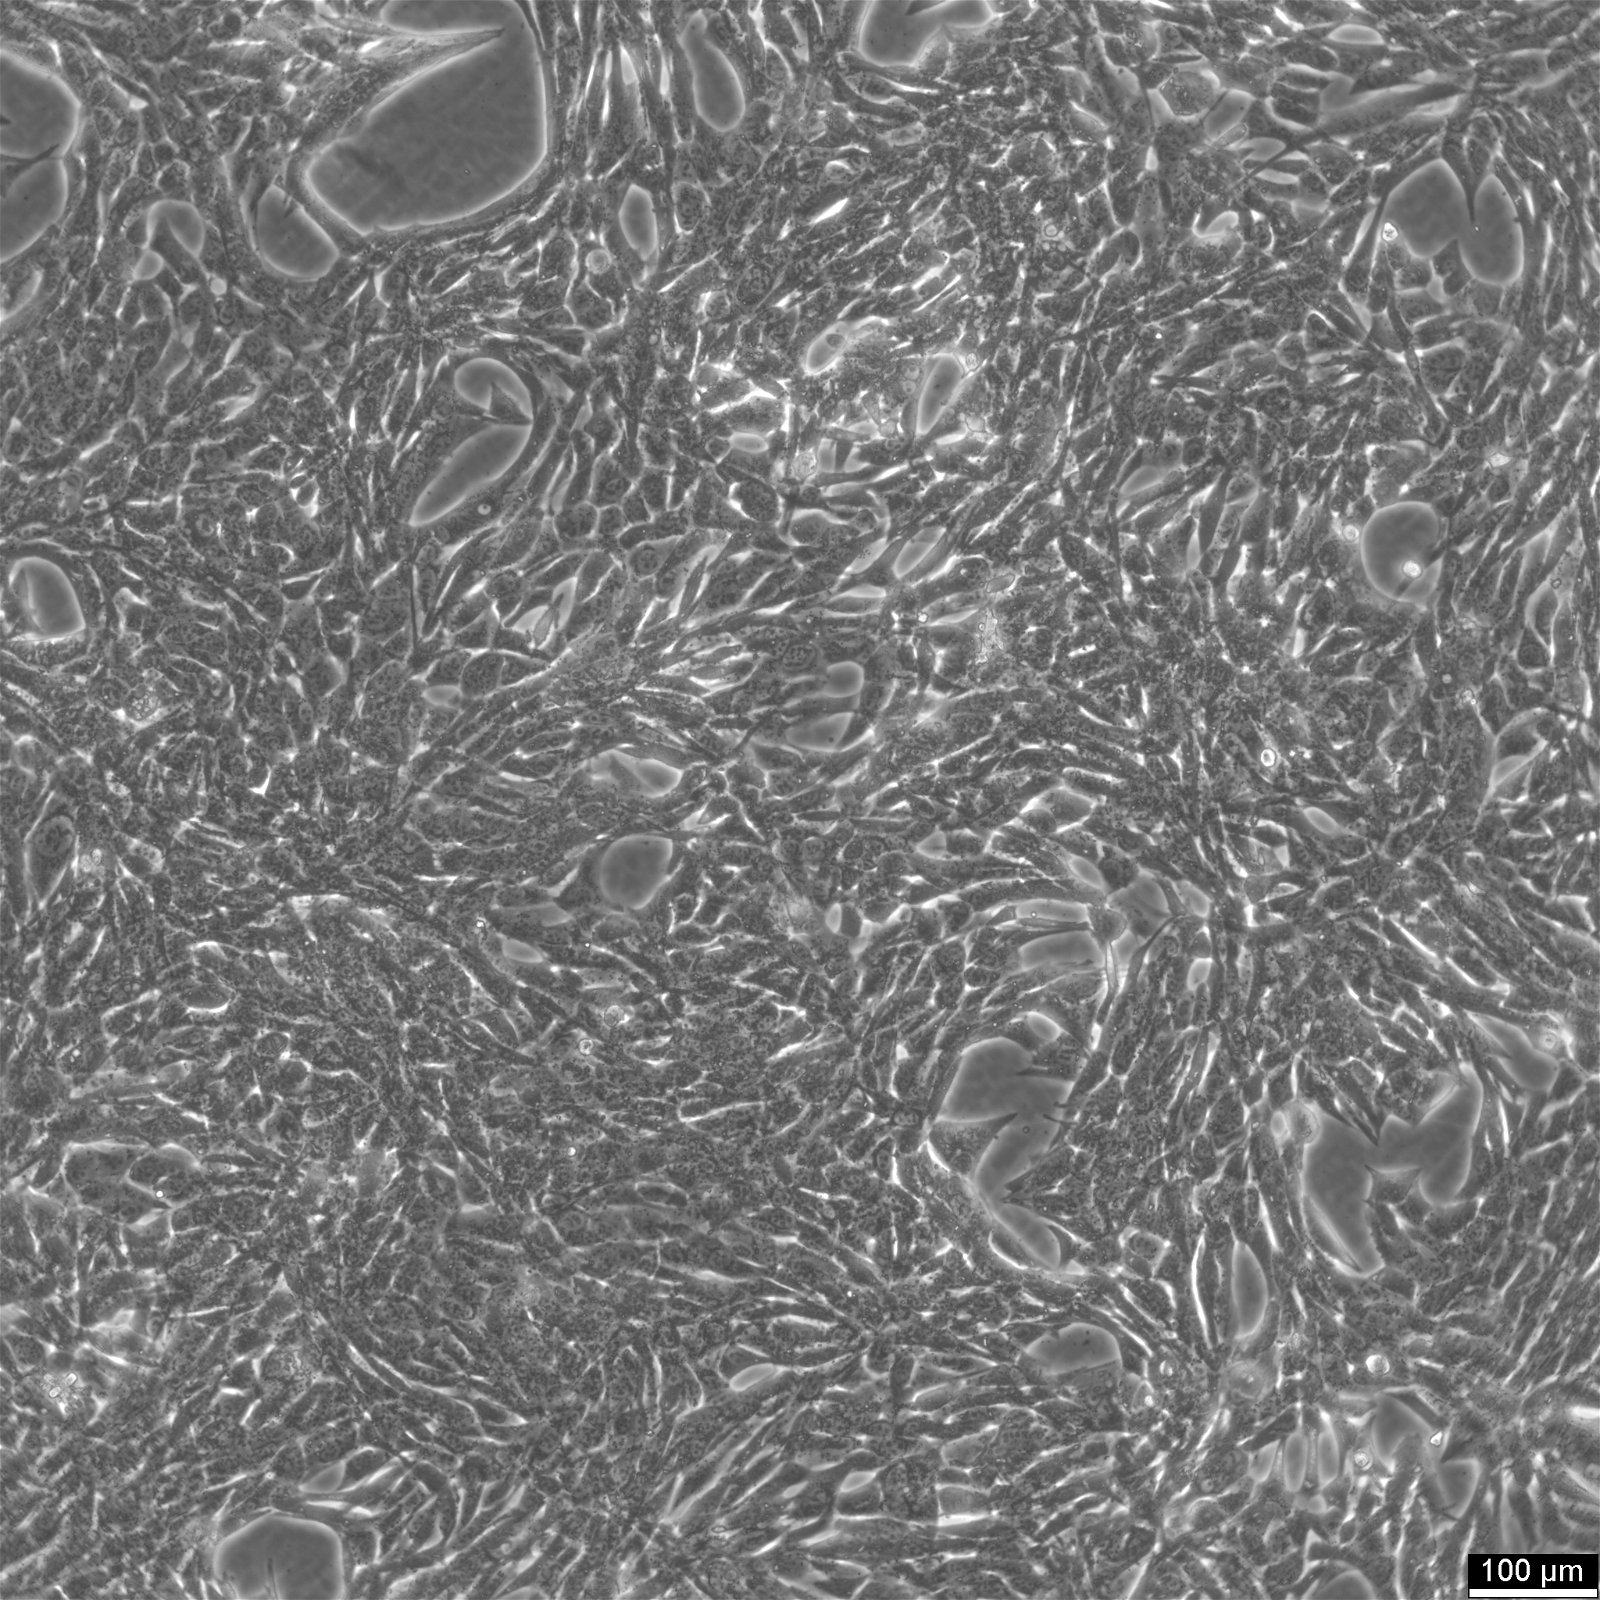
Fordelene ved Panc02-celler
Den viktigste fordelen med Panc02 er dens syngene kompatibilitet med musestammen C57BL/6. Dette innebærer at eksperimenter kan gjennomføres i fullt immunkompetente verter, noe som gjør det mulig for forskere å studere det reelle samspillet mellom svulstceller i bukspyttkjertelen og vertens immunsystem. I motsetning til xenotransplantasjonsmodeller som krever immunsvake mus, bevarer Panc02-systemet T-celle-responser, makrofagaktivitet og naturlige drepecellers funksjon – noe som alt sammen er av avgjørende betydning for moderne immunterapiforskning. Denne egenskapen har gjort Panc02 til den foretrukne modellen for å studere dynamikken til CD4-positive og CD8-positive T-lymfocytter i mikromiljøet rundt bukspyttkjertelsvulsten.
Panc02 er også svært allsidig når det gjelder implantasjonsmetoder. Forskere kan benytte subkutan, ortotopisk eller intraperitoneal implantasjon avhengig av sine eksperimentelle mål. Den ortotopiske modellen, der celler injiseres direkte i bukspyttkjertelhodet, gjenspeiler på den mest trofaste måten den anatomiske og immunologiske konteksten ved humant PDAC. [5] I tillegg er det tilgjengelighet av genmodifiserte Panc02-derivater — herunder linjer som uttrykker luciferase, slik som Panc02-Luc-celler — muliggjør ikke-invasiv bioluminescensavbildning av svulstvekst og metastasering hos levende dyr, noe som forbedrer forsøkskapasiteten betydelig og reduserer antall forsøksdyr.
Fra et praktisk synspunkt er Panc02 en robust og pålitelig voksende, vedheftende cellelinje med en godt karakterisert doblingstid på omtrent 61 timer. Den reagerer på en reproduserbar måte på et bredt spekter av kjemoterapeutiske midler og immunmodulerende behandlinger, noe som gjør den til en utmerket plattform for sammenlignende legemiddelstudier. Den omfattende publiserte litteraturen om Panc02 – som strekker seg over mer enn fire tiår – gir forskere rike historiske referansedata og validerte eksperimentelle protokoller, noe som senker terskelen for nye laboratorier.
Begrensninger ved Panc02-celler
Til tross for sin utbredte bruk er det viktig å være klar over noen biologiske forbehold knyttet til Panc02. Cellelinjen ble etablert gjennom kjemisk karsinogenese, og ikke gjennom den trinnvise opphopningen av mutasjoner som er typisk for humant PDAC. Hos humant duktalt adenokarsinom i bukspyttkjertelen forekommer oftest onkogene KRAS-mutasjoner, inaktivering av CDKN2A, TP53-mutasjoner og tap av SMAD4. Genomsekvensering av Panc02 har avdekket et avvikende mutasjonslandskap, noe som kan begrense muligheten for direkte ekstrapolering av data om legemiddelrespons til menneskelige pasienter. [2] Forskere bør derfor tolke resultatene fra Panc02 som hypotesegenererende, snarere enn som direkte prediktive for kliniske utfall.
En ytterligere begrensning er det relativt moderate metastaseringspotensialet til de opprinnelige Panc02-cellene. I sin opprinnelige form metastaserer denne cellelinjen ikke spontant i særlig stor grad, noe som kan begrense dens anvendelighet i studier av avansert sykdom. Forskere som er på jakt etter en modell med høy metastaseringsevne, må enten benytte derivater som har gjennomgått flere passasjer, slik som Panc02-H7 [4] eller benytte spesialiserte seleksjonsmetoder in vivo. Fremstillingen av slike derivater øker eksperimentets kompleksitet og kan føre til ytterligere fenotypisk avvik fra foreldrelinjen.
Til slutt kan ikke Panc02, som en musecellelinje, fullt ut gjenspeile den genetiske heterogeniteten eller den stromale kompleksiteten ved kreft i bukspyttkjertelen hos mennesker. Selv om det murine tumormikromiljøet er immunkompetent, skiller det seg fra det menneskelige motstykket når det gjelder sammensetningen av immuncelleundergrupper, cytokinmiljøet og den stromale arkitekturen. Resultater fra Panc02-baserte studier bør derfor valideres i komplementære modeller med humane cellelinjer eller pasientavledede organoider før potensielle behandlinger går videre til klinisk anvendelse.
STR-autentisert, mykoplasmafri, klar til levering. Se fullstendige spesifikasjoner og bestill her
Anvendelser
Syngeneiske ortotopiske modeller og forskning på tumorens mikromiljø
Panc02 er hjørnesteinen i syngenisk ortotopisk PDAC-modellering. Partecke og kolleger presenterte en banebrytende karakterisering av denne modellen i 2011, der de viste at ortotopisk injeksjon av Panc02 i bukspyttkjertelhode hos C57BL/6-mus gir opphav til svulster med lokal invasivitet og histologiske trekk som samsvarer med adenokarsinom i bukspyttkjertelen. [5] Avgjørende var at studien viste at Panc02-svulster har et uregelmessig, fingerlignende vekstmønster – i motsetning til den mer sfæriske veksten hos 6606PDA-celler – og at MR pålitelig kan overvåke svulstens vekst over tid i denne modellen. Disse funnene etablerte Panc02 som en klinisk relevant, immunkompetent plattform for forskning på bukspyttkjertelkreft.
Den syngene ortotopiske Panc02-modellen har siden blitt brukt i stor utstrekning til å studere det immunsuppressive tumormikromiljøet. Gnerlich og kolleger demonstrerte at Panc02-svulster rekrutterer regulatoriske T-celler (Tregs) for å undertrykke antitumorimmunitet, og at manipulering av Panc02-celler til å utskille IL-6 fremmet induksjon av Th17-celler og forbedret overlevelse hos mus med svulster. [6] Dette arbeidet fremhevet plastisiteten i tumorens immunmikromiljø og gjennomførbarheten av cytokinbaserte manipulasjonsstrategier innenfor denne modellen.
Mer nylig utnyttet Gao og kolleger den ortotopiske Panc02-modellen for å evaluere komplementbasert immunterapi. [7] Ved å uttrykke membranbundet properdin på Panc02-celler forsterket de galaktose-α-1,3-galaktose-mediert komplementaktivering og økte komplementavhengig cytotoksisitet. Modellen viste seg å være følsom for denne immunintervensjonen, noe som understreker dens verdi for å analysere medfødte immunveier i mikro miljøet rundt svulsten i bukspyttkjertelen. Park og kolleger brukte videre en Panc02-transplantert musemodell for å undersøke diabetesrelatert betennelse som en drivkraft for progresjon av bukspyttkjertelkreft, og påviste sirkulerende tumorceller via kvantepunktkonjugerte aptamerer. [8]
Resistens mot kjemoterapi og nye legemiddeladministrasjonssystemer
Resistens mot gemcitabin er en sentral klinisk utfordring ved kreft i bukspyttkjertelen, og Panc02 har blitt mye brukt til å undersøke dette problemet og til å evaluere nye behandlingsstrategier. Takhsha og kolleger demonstrerte i en syngen Panc02-musemodell at ATG4B-hemmeren UAMC-2526 forsterket den kjemoterapeutiske effekten av gemcitabin betydelig ved å undertrykke autofagi i det hypoksiske tumormikromiljøet. [9] Denne studien fremhevet hvordan hemming av autofagi kan gjøre PDAC-celler mer mottakelige for standard kjemoterapi, noe som gir et grunnlag for kombinasjonsbehandlinger. Zhang og kolleger utvidet dette konseptet ved å utvikle antibiotika-legemiddelkonjugater (Tob-SS-Gm-nanopartikler) som kovalent binder tobramycin og gemcitabin via disulfidbindinger, rettet mot intratumorale bakterier som uttrykker cytidindeaminase og dermed nedbryter gemcitabin. [10] Tester i Panc02-celler bekreftet at konjugeringen bevarte både den antibakterielle og den kjemoterapeutiske aktiviteten, noe som etablerte en strategi med dobbel funksjon mot kjemoresistens.
Nanopartikkelbasert legemiddeltilførsel har vist seg å være et viktig anvendelsesområde for Panc02. Li og kolleger demonstrerte at selen-nanopartikler stabilisert med Lycium barbarum-polysakkarid og lastet med triptolid oppnådde betydelig lavere IC50-verdier i Pan02-celler sammenlignet med fritt triptolid, med vedvarende syreavhengig legemiddelfrigjøring. [11] Ge og kolleger utviklet RGD-peptid/dekstransulfat-nanobærere for dobbeltmålrettet levering av triptolid til både Pan02-tumorceller og M2-lignende tumorassosierte makrofager, ved å utnytte interaksjoner mellom integrin αvβ3–RGD og SR-A–dekstransulfat-interaksjoner for å oppnå preferensiell akkumulering i svulsten. [12] Samlet sett illustrerer disse studiene hvordan Panc02 fungerer som en allsidig in vitro- og in vivo-screeningsplattform for optimalisering av nanoformuleringer.
Ytterligere innovasjoner innen legemiddeltilførsel som er testet i Panc02, inkluderer eksosombaserte formuleringer med tre legemidler og nanopartikelsystemer basert på albumin. Zhang og kolleger lastet eksosomer avledet fra mesenkymale stamceller fra benmarg med galektin-9-siRNA, et gemcitabin-prodrug og indocyaningrønt, og påviste økt apoptose i bukspyttkjertelkreftceller med pH-avhengig legemiddelfrigjøring. [13] Wen og kolleger utviklet polyallylaminhydroklorid-modifiserte nanopartikler av bovint serumalbumin lastet med α-solanin, noe som viste effektiv hemming av Panc02-celleproliferasjon, migrasjon og invasjon. [14] Kong og kolleger utviklet et CGT-Cls-PTX/CM-nano-samleveringssystem ved bruk av antigener avledet fra PANC02-cellemembranen for å samlevere paklitaxel og tumorantigener, noe som stimulerte modning av dendritiske celler og lindret immunsuppresjon. [15]
Immunoterapi og immunmodulering
Den immunkompetente naturen til den syngene Panc02-modellen gjør den særdeles egnet til å evaluere immunterapeutiske strategier. Hydroksytyrosol, et polyfenol hentet fra olivenolje, viste seg å hemme Panc02-celleproliferasjon via STAT3/Cyclin D1-signalveien in vitro, mens det hos mus med ortotopiske svulster undertrykte svulstvekst, reduserte myeloide suppressorceller (MDSC-er) og økte M1-makrofagpolariseringen. [16] Denne studien illustrerte hvordan ortotopiske Panc02-modeller samtidig kan vurdere både direkte cytotoksiske effekter og immunmodulerende mekanismer hos kandidatmidler.
Mikrobiombasert immunterapi har også blitt undersøkt ved bruk av Panc02-modeller. Li og kolleger gjennomførte en detaljert studie på mus ved hjelp av ortotopisk Pan02-tumorimplantasjon for å evaluere fekal mikrobiotatransplantasjon (FMT) kombinert med 5-fluorouracil, og viste at FMT modulerte sammensetningen av tarmmikrobiotaen og forsterket systemiske immunresponser, noe som forbedret antitumoreffekten. [17] Vruzhaj og kolleger testet genmodifisert Escherichia coli Nissle 1917 som en oral leveringsvektor for glypican-1 i en PANC02-basert immunterapimodell, og bekreftet ekspresjon og stabilitet av GPC1-flagellin-fusjonsproteinet i modifiserte Panc02-celler som et skritt mot oral kreftvaksinasjon. [18] Disse studiene gjenspeiler en økende interesse for det gastrointestinale mikrobiomet som en modulator av immunterapi mot bukspyttkjertelkreft.
Onkolytisk viroterapi representerer en annen immunterapeutisk metode som er studert i Panc02-sammenheng. Forskning som sammenligner intertumoral heterogenitet på tvers av PDAC-cellelinjer med C57BL/6-bakgrunn, inkludert Panc02, viste at effekten av onkolytisk vesikulært stomatittvirus varierte markant mellom syngene linjer, der Panc02 fungerte som et referansepunkt for å kontekstualisere forskjellig viral mottakelighet. Dette arbeidet understreket betydningen av cellulær heterogenitet ved tolkning av resultater fra onkolytisk viroterapi og dannet grunnlag for utformingen av kombinasjonsstrategier for å overvinne tumorens evne til å unnslippe.
Mekanismer for metastase og tumorprogresjon
Panc02 har vært avgjørende for å generere stadig mer metastatiske derivater for å studere det molekylære grunnlaget for spredning av PDAC. Wang og kolleger etablerte Panc02-H7-linjen gjennom iterativ ortotopisk implantasjon og isolering av mikrometastaser i leveren, og skapte dermed en serie av stadig mer aggressive underlinjer som kulminerte i Panc02-H7, som viste peritoneal spredning og fjernmetastaser til lever og lunger. [4] Denne modellen utgjorde en av de første klinisk relevante plattformene for å studere hematogen og peritoneal metastatisk spredning i en immunkompetent vert.
Mer nylig etablerte Takahashi-Yamashiro og kolleger svært metastatiske Panc02-3P-derivater gjennom tre serielle ortotopiske transplantasjonssykluser. [19] RNA-sekvensering avdekket mesenkymlignende endringer i genuttrykk i Panc02-3P-celler sammenlignet med den opprinnelige Panc02-stammen, noe som tyder på at medlemmer av lysyloxidase-familien er nye molekylære mål i PDAC-progresjon — selv i fravær av kanoniske endringer i EMT-transkripsjonsfaktorer. Rollen til epitel-mesenkymal overgang i Panc02-biologien ble ytterligere undersøkt av Wang og kolleger, som viste at FV-429, et flavonoidderivat, hemmet migrasjon og invasjon av bukspyttkjertelkreftceller ved å modulere Hippo/YAP1-signalveien og EMT-relaterte proteiner. [20]
Perineural invasjon — et kjennetegn ved aggressiv PDAC — har også blitt undersøkt ved hjelp av Panc02. Hua og kolleger implanterte Panc02-luc-celler ortotopisk for å etablere en modell for perineural invasjon og påviste at Slc26a9-ekspresjonen var markant forhøyet i PNI-positiv PDAC. [21] Mekanistiske studier pekte på at Slc26a9 bidrar til å fremme angstlignende atferd og mekanisk hyperalgesi hos mus med svulster, og knytter dermed svulstbiologi til klinisk relevante smertefenotyper. Zhang og kolleger brukte i tillegg subkutane og ortotopiske levermetastasemodeller med Panc02 for å belyse rollen til EMP1 — en aldersrelatert faktor — i å akselerere progresjonen av bukspyttkjertelkreft, og påviste at overekspresjon av EMP1 forsterket tumorvekst og metastasering. [22]
Fotodynamiske og fysiske ablasjonsterapier
Panc02-celler har fungert som et relevant testsystem for fotodynamisk terapi (PDT) og fysiske ablasjonsmetoder. Xu og kolleger syntetiserte en serie organell-målrettede fotosensibilisatorer basert på pyrofeophorbid a, og evaluerte varianter rettet mot mitokondrier, lysosomer, endoplasmatisk retikulum og cellekjernen med tanke på deres evne til å konsentrere reaktive oksygenarter på kritiske subcellulære steder og forbedre PDT-effekten, med testing utført på flere kreftcellelinjer, inkludert Panc02. [23] Denne systematiske sammenligningen ga mekanistisk innsikt i organellmålretting som en strategi for å overvinne begrensningene ved konvensjonelle fotosensibilisatorer.
Wang og kolleger evaluerte kombinasjonen av lavfrekvente ultralydstimulerte mikrobobler (USMB) og radiofrekvensablasjon (RFA) i Panc02-celler og mus med subkutane xenotransplantater. [24] CCK-8-analyser viste en betydelig undertrykkelse av Panc02-celleproliferasjon med kombinasjonsbehandlingen, og mus med svulster viste forbedret overlevelse og modulering av immunrelaterte og apoptose-relaterte faktorer. Denne studien demonstrerte potensialet ved å kombinere fysiske ablasjonsmetoder med sonodynamisk forstyrrelse av svulstens mikromiljø, et konsept som på en unik måte kan testes i den immunkompetente Panc02-modellen.
Konklusjon
Panc02 (CVCL_D627) inntar en sentral posisjon i forskningen på bukspyttkjertelkreft som en syngen, immunkompetent musemodell for duktalt adenokarsinom i bukspyttkjertelen. Fra etableringen gjennom kjemisk karsinogenese hos C57BL/6-mus i 1984 [1] til dagens anvendelse innen nanoteknologi for legemiddeladministrasjon, immunologi i tumorens mikromiljø, onkolytisk viroterapi og metastasebiologi, har cellelinjen vist en bemerkelsesverdig vitenskapelig levetid. Dens egenskaper ved ortotopisk implantasjon — godt dokumentert av Partecke og kolleger [5] — og dens kompatibilitet med moderne bioluminescensavbildning gjør den til en allsidig og pålitelig plattform for preklinisk evaluering av nye behandlingsformer for svulster i bukspyttkjertelen. Uansett om laboratoriet ditt undersøker duktalt karcinom i bukspyttkjertelen, utforsker mage-tarmmikrobiomets rolle i behandlingsresponsen eller utvikler neste generasjons leveringssystemer med nanopartikler, gir Panc02 et vitenskapelig validert grunnlag. Besøk cytion.com for å se de fullstendige produktspesifikasjonene eller for å kjøpe Panc02-celler til din forskning.
Viktige publikasjoner
- Corbett TH, Roberts BJ, Leopold WR (1984) Induksjon og kjemoterapeutisk respons hos to transplanterbare duktale adenokarsinomer i bukspyttkjertelen hos C57BL/6-mus. Cancer Research. PMID: 6692374
- Wang Y, Zhang Y, Yang J (2012) Genomsekvensering av nøkkelgener i museceller med kreft i bukspyttkjertelen. Current Molecular Medicine. PMID: 22208613
- Torres MP, Rachagani S, Souchek JJ (2013) Nye bukspyttkjertelkreftcellelinjer avledet fra genetisk modifiserte musemodeller av spontant adenokarsinom i bukspyttkjertelen: anvendelser i diagnose og behandling. PloS One. PMID: 24278292
- Wang B, Shi Q, Abbruzzese JL (2001) En ny, klinisk relevant dyremodell for biologi og behandling av metastatisk adenokarsinom i bukspyttkjertelen. International Journal of Pancreatology. PMID: 11558631
- Partecke LI, Sendler M, Kaeding A (2011) En syngen ortotopisk musemodell for adenokarsinom i bukspyttkjertelen hos C57/BL6-musen ved bruk av cellelinjene Panc02 og 6606PDA. European Surgical Research. PMID: 21720167
- Gnerlich JL, Mitchem JB, Weir JS (2010) Induksjon av Th17-celler i tumorens mikromiljø forbedrer overlevelsen i en musemodell for kreft i bukspyttkjertelen. Journal of Immunology. PMID: 20805420
- Gao M, Kechagia S, Ramachandran M (2026) Forming av tumormikromiljøet ved å forsterke komplementkaskaden for forbedret immunrespons i en modell for bukspyttkjertelkreft. Molecular Cancer Therapeutics. PMID: 41159389
- Park Y, Kim ST, Kim YM (2025) Betydningen av diabetesrelatert betennelse ved bukspyttkjertelkreft vurdert ved aptamerbasert påvisning av sirkulerende tumorceller i en streptozotocin-indusert Panc02-transplantert musemodell. Annals of Hepato-Biliary-Pancreatic Surgery. PMID: 40759530
- Takhsha FS, Vangestel C, Tanc M (2021) ATG4B-hemmeren UAMC-2526 forsterker den kjemoterapeutiske effekten av gemcitabin i en Panc02-musemodell for duktalt adenokarsinom i bukspyttkjertelen. Frontiers in Oncology. PMID: 34868951
- Zhang Z, Zhang F, Yang W (2026) Antibiotika-legemiddelkonjugater: Forbedring av kjemoimmunoterapi med gemcitabin mot bukspyttkjertelkreft ved å eliminere bakterier i svulsten. Biomaterials. PMID: 42302584
- Li X, Su Y, Lin N (2025) Lycium barbarum-polysakkarid-stabiliserte selen-nanopartikler leverer triptolid for å indusere apoptose ved bukspyttkjertelkreft in vitro og in vivo. ACS Omega. PMID: 40352487
- Ge Y, Zhu X, Zhang Z (2025) RGD-peptid/dekstransulfat-baserte nanobærere lastet med triptolid for dobbeltmålrettet apoptose av både tumorceller og M2-lignende TAM-er i behandling av bukspyttkjertelkreft. International Journal of Biological Macromolecules. PMID: 40345287
- Zhang R, Zhang Y, Hao F (2025) Eksosommediert levering av tre legemidler forsterker apoptose i bukspyttkjertelkreftceller. Apoptosis: An International Journal on Programmed Cell Death. PMID: 40488835
- Wen Z, Luo S, Liu J (2025) Nanopartikler av bovint serumalbumin modifisert med polyallylaminhydroklorid, lastet med α-solanin, for kjemoterapi av bukspyttkjertelkreft. International Journal of Nanomedicine. PMID: 40225222
- Kong Y, Zhao J, Xu B (2026) Konstruksjon og synergistisk effekt av et CGT-Cls-PTX/CM-nanodistribusjonssystem rettet mot tumormikromiljøet. Nanotechnology. PMID: 41554179
- Wang B, Yang L, Liu T (2021) Hydroksytyrosol hemmer MDSC-celler og fremmer M1-makrofager hos mus med ortotopisk bukspyttkjertelsvulst. Frontiers in Pharmacology. PMID: 34858184
- Li R, Hu Y, Liu Y (2025) Fekal mikrobiotatransplantasjon forsterker effekten av 5-fluorouracil ved bukspyttkjertelkreft gjennom modulering av tarmmikrobiota. Frontiers in Microbiology. PMID: 41078530
- Vruzhaj I, Gambirasi M, Busato D (2025) Immunbehandling basert på tarmmikrobiota: Genmodifisert Escherichia coli Nissle 1917 for oral administrering av glypican-1 ved kreft i bukspyttkjertelen. Medicina (Kaunas, Litauen). PMID: 40282924
- Takahashi-Yamashiro K, Miyauchi K, Shimomura K (2026) In vitro-funksjonsanalyse av medlemmer av lysyloxidase-familien i svært metastaserende bukspyttkjertelkreftceller avledet fra en syngen ortotopisk modell. BMC Cancer. PMID: 42298507
- Wang Z, Pan X, Ma X (2025) FV-429 hemmer kreftcellers migrasjon og invasjon via EMT gjennom Hippo/YAP1-signalveien i bukspyttkjertelkreftceller. Anti-Cancer Drugs. PMID: 40071582
- Hua B, Huang X, Chen L (2025) Slc26a9 fremmer perineural invasjon av bukspyttkjertelkreft hos mus. Biochemical and Biophysical Research Communications. PMID: 41232379
- Zhang J, Gu J, Zhang T (2025) Aldringsprosessens og den relaterte faktoren EMP1s rolle i å fremme progresjonen av resekterbar bukspyttkjertelkreft. Genes & Diseases. PMID: 40612666
- Xu Y, Zeng W, Liu R (2026) Organell-målrettede fotosensibilisatorer for forbedret fotodynamisk kreftbehandling. Bioconjugate Chemistry. PMID: 42186767
- Wang H, Ding W, Shi H (2021) Kombinasjonsbehandling med lavfrekvent ultralydbestråling og radiofrekvensablasjon som en synergistisk behandling av kreft i bukspyttkjertelen. Bioengineered. PMID: 34696663
Se de fullstendige spesifikasjonene eller bestill MC3T3-E1-celler på cytion.com.